
文章标题:The effects of acetamiprid exposure on osteoporosis: inducing imbalanced bone remodeling by disrupting the equilibrium of adipogenic/osteoblast/osteoclast differentiation
发表期刊:Journal of Hazardous Materials
影响因子:10.6
客户单位:宁夏医科大学
百趣提供服务:蛋白质组学
研究背景
啶虫脒(Acetamiprid, ACE)是一类应用很广泛的新烟碱类杀虫剂,环境介质与人体生物样本中均可检测到啶虫脒及其代谢物。目前针对啶虫脒的毒理学研究多集中于神经毒性、肝、肾毒性等方向,但其对骨代谢的潜在影响尚未得到充分关注。已有流行病学证据提示,ACE及其主要代谢产物N-去甲基啶虫脒(N-dm-ACE)是骨质疏松患病风险的主要相关风险因子,但二者介导骨重塑紊乱的具体效应与关键分子靶点尚不明确。为此,本研究整合网络毒理学、分子对接与分子动力学模拟,结合体内、体外实验,解析ACE与N dm ACE诱导骨损伤的效应及分子机制,为新烟碱类农药的人体骨骼健康风险评估提供科学依据。
研究结果
01.ACE和N-dm-ACE的ADMET评估
本研究利用ProTox 3.0、ADMETlab 3.0和VenomPred 2.0开展ADMET及毒理预测,分析ACE及其代谢产物N dm ACE的理化及ADMET特征。二者理化参数均符合Lipinski、GSK及金三角规则,具备较好的口服吸收和体内分布潜力。毒性分级提示ACE(3级,吞食有毒)的急性口服毒性高于N-dm-ACE(4级,吞食有害)。药代预测显示,两种化合物肠道通透性高,但可抑制OATP1B1、OATP1B3、MRP1转运蛋白功能;二者均为CYP1A2、CYP2C9、CYP3A4的底物,其中ACE还可抑制CYP2C8;二者清除率低但半衰期较短,存在组织蓄积倾向。毒性预测结果表明,ACE和N-dm-ACE存在急性毒性、肝肾毒性、神经毒性、遗传毒性、致癌及致突变、生态毒性等多终点风险。结构分析表明,叔氨基对ACE的急性口服毒性起到主要作用,氯代吡啶基团上的氯原子是N-dm-ACE急性口服毒性的关键基团。
02.ACE暴露对小鼠骨组织的影响
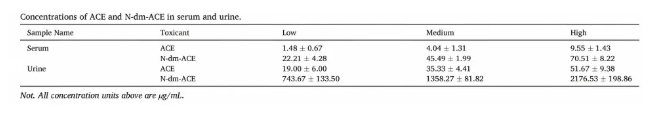
本研究构建为期6个月的小鼠ACE口服暴露模型。暴露小鼠第23周体重显著高于对照组(图1a)。LC-MS/MS分析结果证实ACE主要代谢为N-dm-ACE,血清、尿液中Ndm-ACE浓度分别为ACE的11.67倍、40.85倍,代谢产物主要经尿液排泄(图1b-c,表1)。
6个月ACE暴露后,Micro-CT结果显示ACE暴露可损伤骨小梁结构,中、高剂量组BMD、Tb.BV/TV下降,高剂量组Tb.Pf升高、Tb.N降低,皮质骨相关参数无显著变化;SEM观察到中、高剂量暴露组骨小梁稀疏、宽度减小(图1d-h)。血清检测显示ACE暴露后PINP水平下降、CTX I水平上升,提示骨代谢平衡被打破。高剂量组血清Ca2+、TNF-α、IL-6、IL-1β水平升高,骨组织中炎症因子蛋白表达同步上调(图1i-l)。
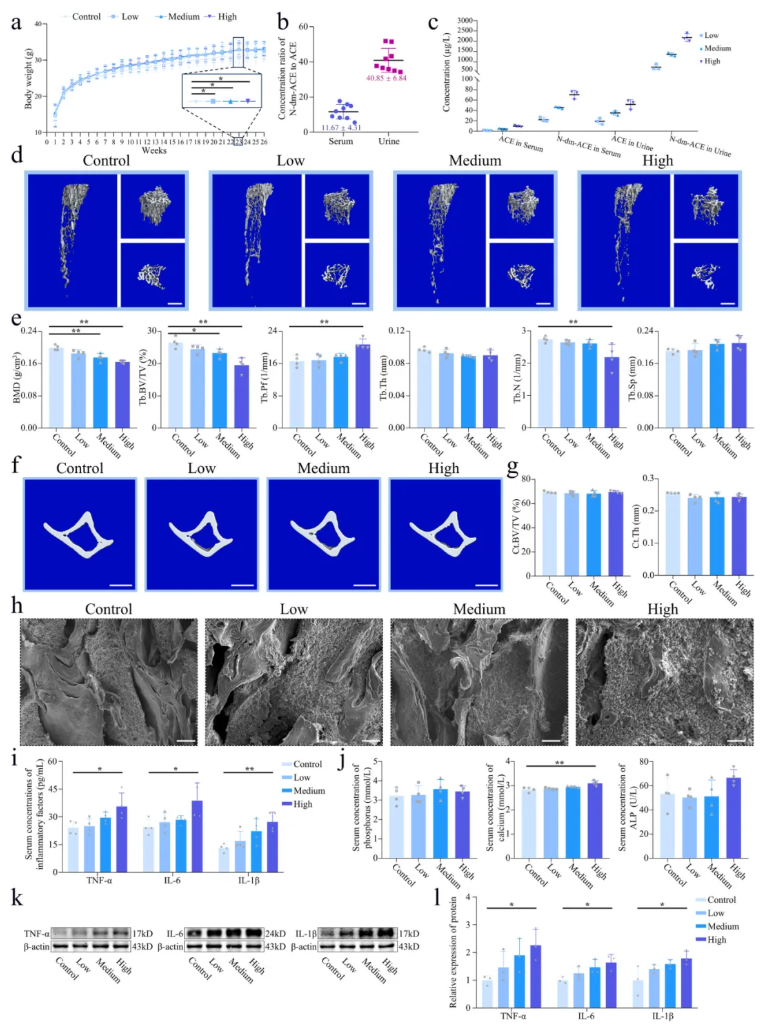
图1. 6个月ACE暴露对小鼠骨组织的影响
表1. 小鼠血清与尿液中ACE及N dm ACE的浓度
TEM超微结构观察结果显示,与对照组相比,ACE暴露组小鼠骨组织内的骨细胞、成骨细胞和破骨细胞均出现不同程度的线粒体损伤,主要表现为线粒体肿胀、膜结构模糊、嵴结构消失。值得注意的是,尽管破骨细胞同样存在上述线粒体损伤,但其线粒体的数量与密度较对照组明显增加(图2)。
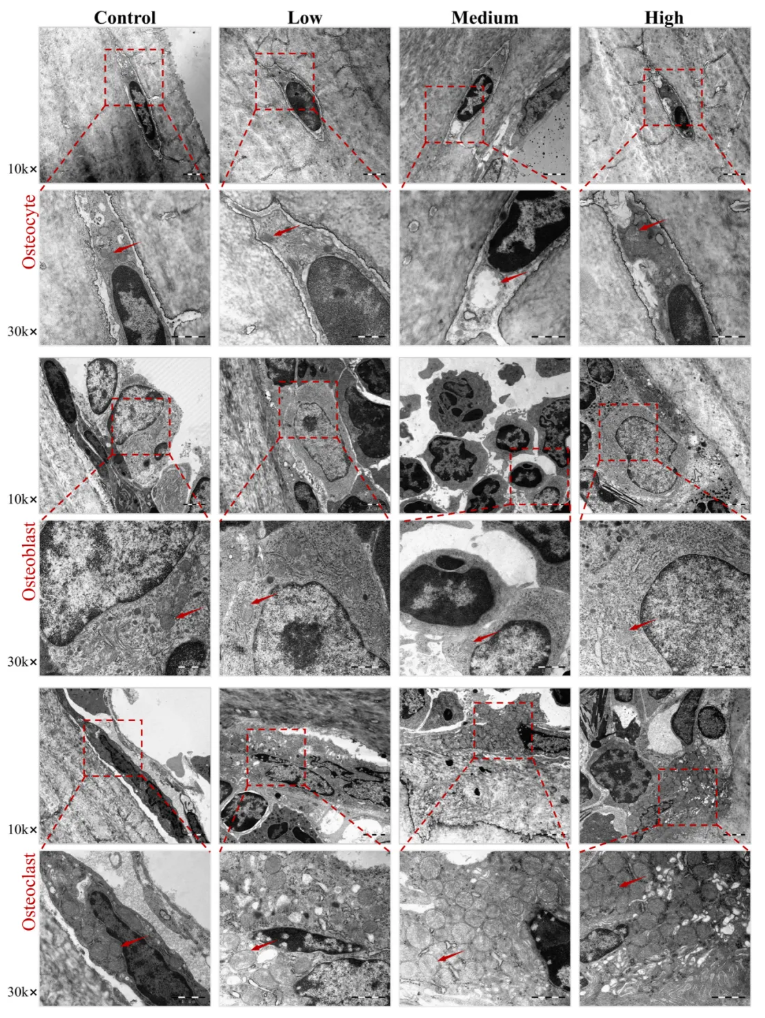
图2. 6个月ACE暴露对小鼠骨组织骨细胞、成骨细胞、破骨细胞线粒体的影响
03.ACE暴露致骨质疏松的核心靶点与通路筛选
为解析ACE及其代谢产物N-dm-ACE诱发骨质疏松(Osteoporosis, OP)的潜在靶点与分子机制,本研究开展网络毒理学分析。利用数据库预测得到ACE潜在靶点157个、N-dm-ACE潜在靶点140个,合并去重后共获得191个化合物靶点(图3a);共收集2244个OP相关疾病靶点(图3b)。将化合物靶点与疾病靶点取交集,获得66个共同靶点(图3c-d)。将上述交集靶点导入STRING数据库,构建蛋白质 蛋白质相互作用(PPI)网络。根据网络拓扑参数筛选得到排名前5的核心靶点,分别为PPARγ、STAT3、EGFR、HIF-1α、NF-κB1;其中PPARγ为ACE与N-dm-ACE共有靶点,STAT3为ACE特异性靶点(图3e)。PPARγ是调控成脂分化的关键转录因子。
GO功能富集分析结果显示,交集靶点主要富集于核受体活性、转录调控、炎症反应等(图3f)。KEGG通路富集共筛选出91条显著富集通路,涵盖破骨细胞分化、钙信号通路、FoxO信号通路、AGE RAGE信号通路、AMPK信号通路、细胞凋亡、JAK-STAT信号通路等,提示ACE暴露可通过多条通路共同调控骨质疏松的发生发展(图3g)。
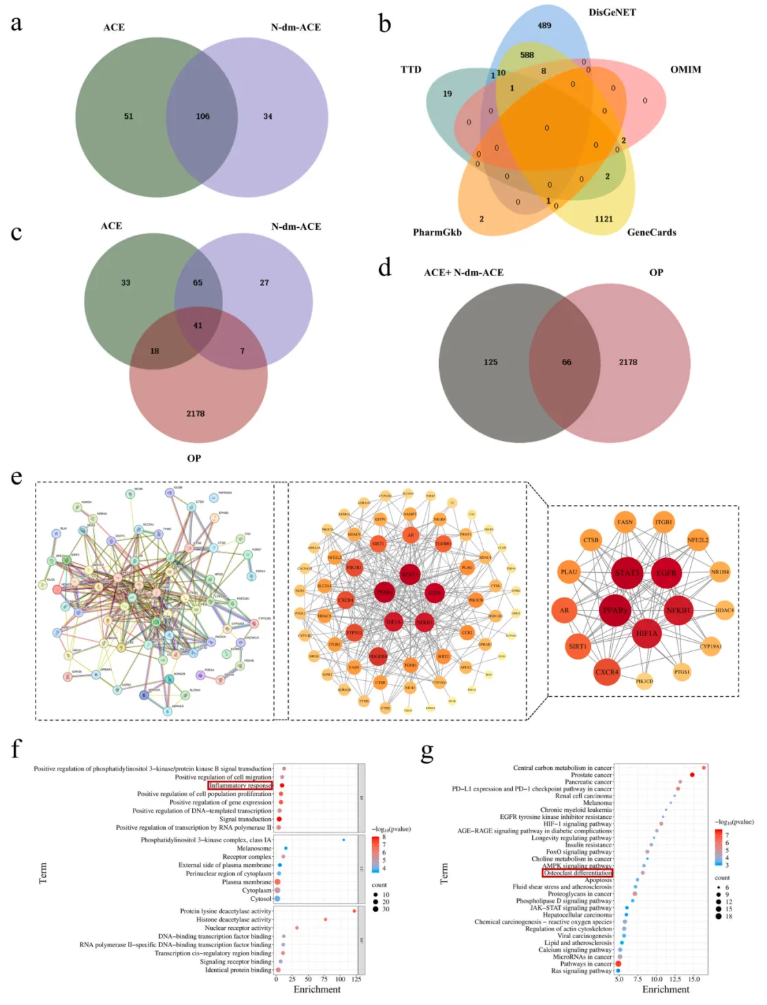
图3. ACE暴露致骨质疏松的网络毒理学分析
04.ACE和N-dm-ACE与核心靶点的分子对接与MD模拟
为进一步探究ACE、N-dm-ACE与骨质疏松排名前5位的核心靶点之间的相互作用,本研究开展分子对接及分子动力学(MD)模拟分析。分子对接结果显示,ACE可与PPARγ、STAT3、EGFR、NF-κB1结合;N-dm-ACE可与PPARγ、HIF-1α、NF-κB1结合。7组复合物均可自发结合,结合能均低于−4.25 kcal/mol(表2)。其中PPARγ与两种化合物的结合亲和力最强,且N-dm-ACE对PPARγ的结合亲和力高于ACE。在PPARγ配体结合结构域中,ACE主要与LYS450、GLN458、LEU459、PHE460残基发生相互作用;N-dm-ACE则作用于VAL321、THR325、VAL343、LYS347、VAL350、GLU499残基,通过范德华力、疏水作用以及氢键等非共价相互作用使复合物保持稳定(图4a)。
分子动力学模拟验证了复合物体系的稳定性。PPARγ-ACE与PPARγ-N--ACE体系分别在40ns、50ns后达到动力学平衡,RMSD值在2~2.5Å 区间波动。Rg、SASA参数出现小幅波动,提示配体结合引起蛋白构象改变;氢键与RMSF分析结果表明,模拟全过程中配体-蛋白之间能够维持稳定相互作用(图4b-f)。
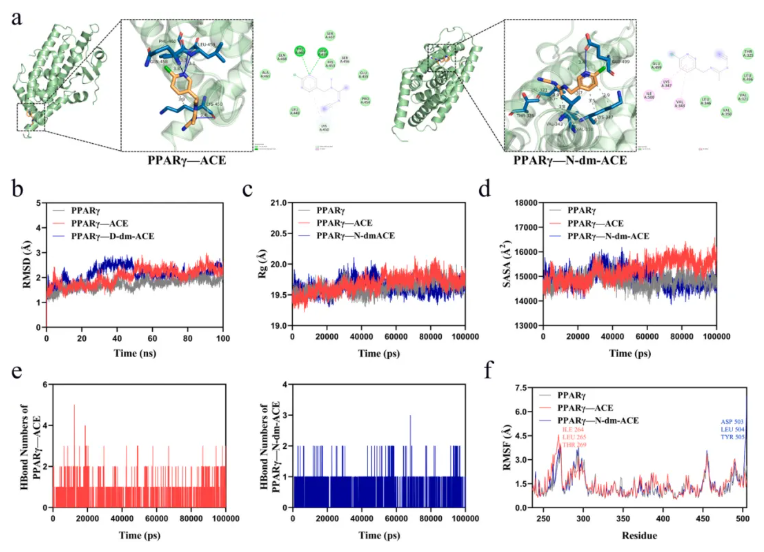
图4. PPARγ与ACE、N-dm-ACE的分子对接及分子动力学模拟
05.ACE暴露对BMSCs成骨-成脂分化的影响
本研究通过体内、体外实验验证ACE对PPARγ/C/EBPα、RUNX2/PPARγ通路及BMSCs分化的调控效应。ACE暴露1、3、6个月小鼠骨组织 HE染色可见中、高剂量组脂滴空泡增多,成脂分化增强(图5a)。WB结果显示暴露组PPARγ、C/EBPα蛋白表达水平升高,RUNX2蛋白表达水平降低,中、高剂量变化最突出(图5b-c);OCN免疫荧光提示成骨标志物表达下降。
分离6个月暴露小鼠原代BMSCs进行诱导分化,成骨分化时Runx2、Col1a1、Osx表达下调,细胞矿化能力受损;成脂分化时Pparg、Cebpa、Lpl表达上调,成脂分化增强(图5d-g)。综上,ACE通过激活PPARγ/C/EBPα通路促进成脂分化;同时PPARγ竞争性抑制RUNX2,进而抑制成骨分化,造成BMSCs成骨-成脂分化稳态失衡。
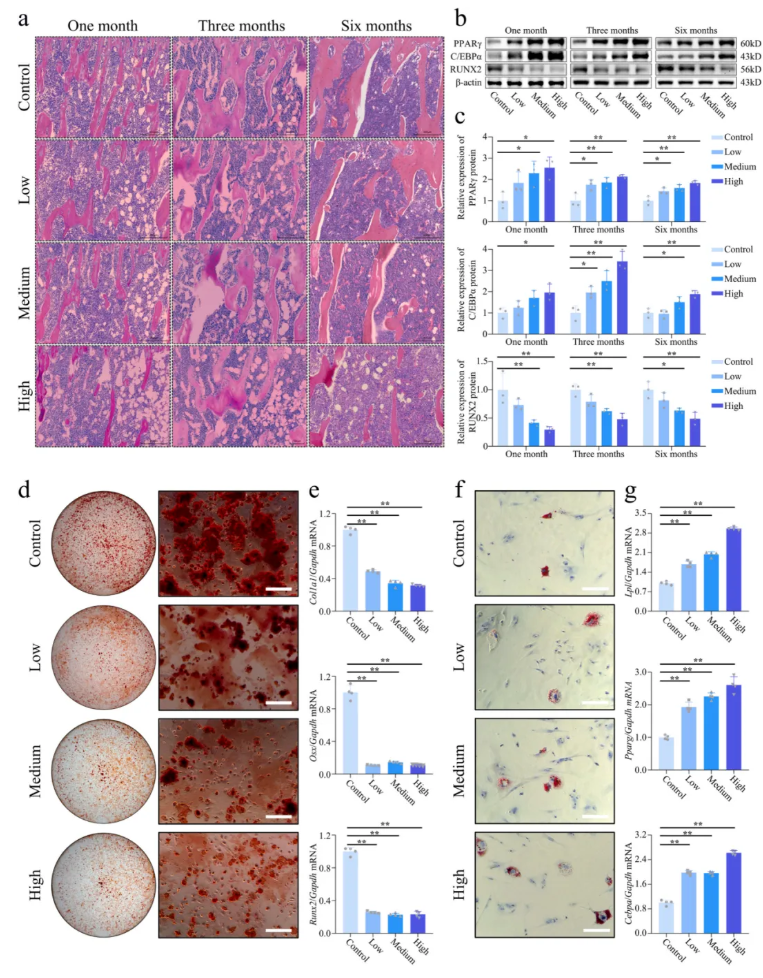
图5. ACE暴露对成骨及成脂分化的影响
06.ACE暴露对破骨细胞分化的影响
为探究ACE暴露对破骨细胞分化的作用,本研究开展体内与体外实验。对ACE暴露1、3、6个月小鼠骨组织进行TRAP染色,结果显示高剂量组破骨细胞数量显著增多(图6a-b)。CTSK、MMP9、MMP14为破骨细胞特征标志物;ACE暴露后,中、高剂量组CTSK蛋白表达上调(图6c-d);免疫荧光结果进一步显示MMP9、MMP14荧光强度升高,以高剂量组最为明显,提示骨吸收活性增强(图6e-f)。
分离ACE暴露6个月小鼠原代BMDMs并诱导破骨细胞分化。ACE暴露组破骨细胞标志基因Rank、Ctsk、Trap的mRNA表达上调;中、高剂量组破骨细胞面积增大,单个破骨细胞核数目增多(图6g-i)。由于破骨细胞分化与炎症反应密切相关,本研究进一步检测Nfkb1、Rela及炎症因子Il6、Tnf、Il1b的mRNA水平。除Il1b无明显变化外,其余基因在ACE暴露组均普遍上调(图6j-k)。上述结果表明ACE暴露可促进破骨细胞分化。
对照组与高剂量组的纯化BMDMs进行蛋白质组学分析,共鉴定得到214个差异表达蛋白,其中上调蛋白161个。KEGG富集分析提示差异蛋白显著富集在溶酶体相关通路,包括CTSS、TPP1、ARSG、CTSO、PPT2、NPC2、AP4E1等蛋白,上述蛋白参与破骨细胞分化及骨吸收过程。
RANKL/RANK/OPG通路是调控破骨细胞功能的关键信号通路。骨组织免疫荧光检测结果表明,ACE暴露组OPG蛋白水平与OPG/RANKL比值下降,RANKL、RANK表达升高,说明ACE诱导的破骨细胞异常分化与RANKL/RANK/OPG通路紊乱密切相关。
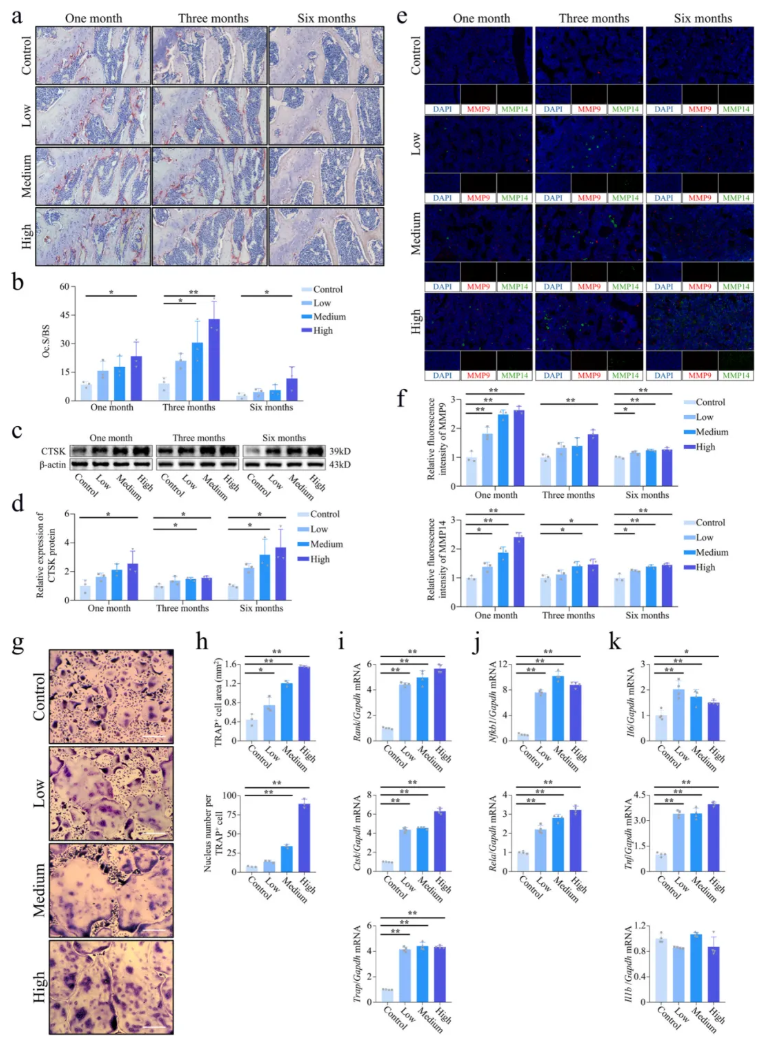
图6. ACE暴露对破骨细胞分化的影响
07.PPARγ在ACE和N-dm-ACE诱导的成骨、成脂及破骨细胞分化中的作用
为验证PPARγ介导ACE、N dm ACE诱导骨代谢损伤的功能,本研究首先鉴定BMSCs表型,流式结果显示CD73、CD44高表达,CD11b、CD45几乎不表达。CCK-8测得BMSCs的IC50:ACE为4.63 mM,N dm ACE为5.35 mM;BMDMs的IC50分别为18.12 mM、24.52 mM,选定1.6 mM作为细胞实验浓度。借助腺病毒构建Pparg敲低细胞模型,免疫荧光与蛋白表达检测证实基因敲低有效。
细胞实验结果表明,同等浓度下N-dm-ACE激活PPARγ的作用强于ACE。ACE和N-dm-ACE会上调PPARγ、C/EBPα蛋白表达,下调RUNX2、OCN蛋白表达(图7a-c);茜素红染色显示二者抑制矿化结节形成,Pparg敲低可恢复矿化能力(图7d)。成骨分化时,ACE和N-dm-ACE下调Runx2、Col1a1、Osx,沉默Pparg可逆转该抑制效应(图7e);成脂分化时二者促进脂滴形成、上调成脂基因,敲低Pparg则抑制成脂表型(图7f-g)。综上,ACE及N-dm-ACE通过激活PPARγ,促进BMSCs成脂分化并抑制成骨分化。
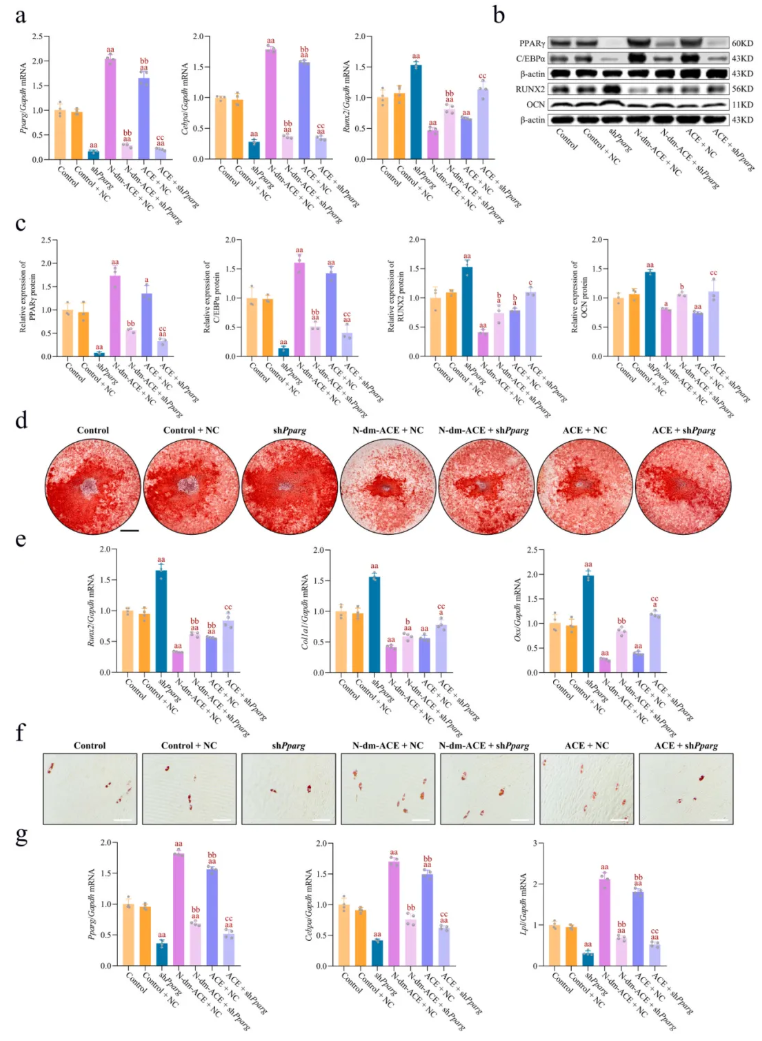
图7. PPARγ介导ACE、N-dm-ACE调控BMSCs成骨、成脂分化
为进一步探究PPARγ在ACE、N-dm-ACE诱导破骨细胞分化过程中的作用,本研究检测BMSCs内OPG、RANKL蛋白表达。结果显示,N dm ACE处理可显著上调RANKL蛋白表达;ACE、N-dm-ACE处理均会显著降低OPG/RANKL比值,而Pparg敲低能够逆转上述改变(图8a-b)。BMSCs培养上清中OPG/RANKL比值也表现出相同变化趋势(图8c)。
在BMDMs破骨分化体系中,TRAP染色结果表明,ACE与N-dm-ACE处理可显著增大TRAP⁺破骨细胞面积,单个破骨细胞的细胞核数量增多;Pparg敲低后,破骨细胞生成明显受到抑制(图8d-e)。同时,破骨分化相关基因Rank、Trap、Ctsk在ACE、N dm-ACE处理组表达显著升高,而在sh-Pparg组表达明显回落(图8f)。
BMSC-BMDMs共培养体系也观察到一致结果:ACE、N-dm-ACE处理使TRAP⁺破骨细胞面积、单个破骨细胞核数增大,破骨相关基因表达上调;Pparg敲低可显著拮抗上述促破骨效应(图8g-i)。
以上结果表明,ACE及N-dm-ACE激活PPARγ信号通路,一方面促进BMSCs成脂分化、抑制其成骨分化;另一方面,既通过调控BMSCs中PPARγ介导的RANKL/RANK/OPG通路间接促进破骨细胞分化,也可直接激活BMDMs的PPARγ,促进破骨细胞分化。
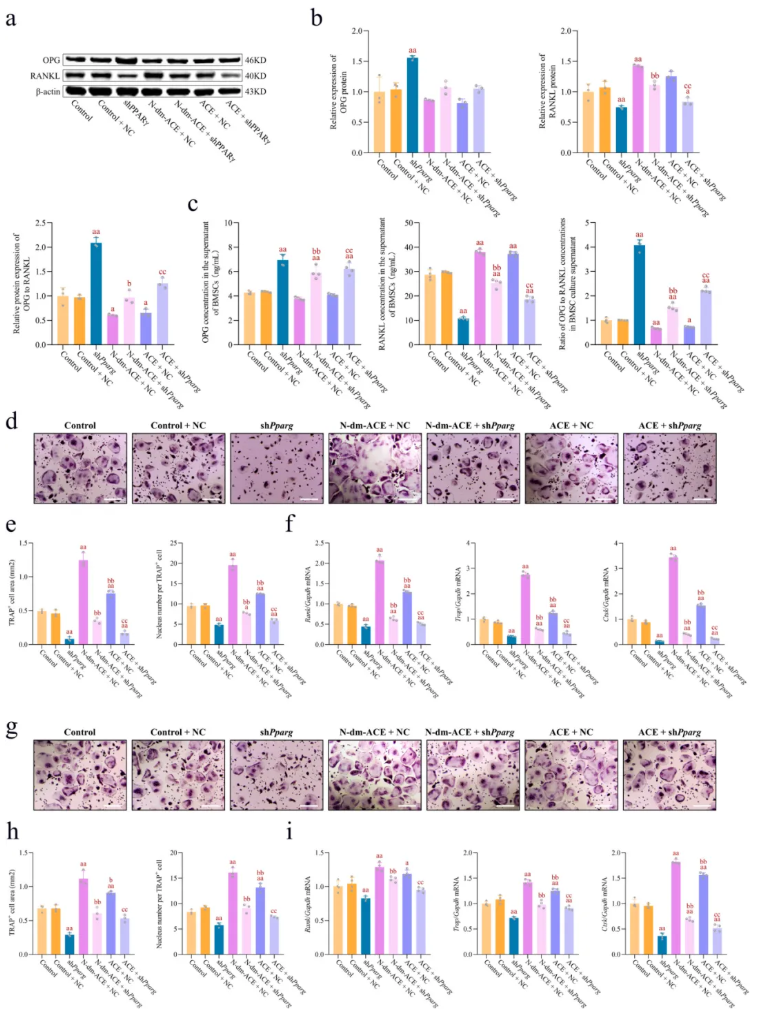
图8. PPARγ在ACE、N-dm-ACE诱导破骨细胞分化中的作用
研究总结
本研究综合运用计算毒理学、网络毒理学、分子对接、MD模拟及体内外实验,揭示ACE暴露可诱发骨小梁丢失,改变PINP、CTX-I骨代谢标志物水平,并诱导全身及骨局部炎症反应。经网络毒理学筛选得到PPARγ、STAT3、EGFR、HIF-1α、NF-κB1关键靶点;分子对接与动力学模拟表明ACE、N-dm-ACE可与上述靶点形成稳定结合,其中与PPARγ的结合亲和力最优。ACE及其代谢产物N-dm-ACE可打破成脂-成骨-破骨细胞分化稳态,引发RANKL/RANK/OPG通路失调,促进骨质疏松进展;沉默Pparg可部分逆转上述损伤,提示PPARγ激活在ACE、N-dm-ACE介导的骨重建失衡中发挥关键介导作用。