
文章标题:ALDH2-mediated GABA biosynthesis regulates hippocampal LTP and learning adaptability
发表期刊:nature chemical biology
影响因子:15.8
研究背景
传统组学手段极大推动神经生物学的机制解析。其中,批量(Bulk)代谢组依赖组织匀浆开展检测,会将组织内多种不同类型细胞的代谢信号混合平均,丢失细胞异质性信息;而被广泛应用的单细胞转录组,反映的是基因转录表达水平,无法直接表征细胞内实时、动态的小分子代谢状态,很难捕捉突触可塑性这类快速生理事件下的代谢重编程过程。
海马组织是调控学习记忆的关键脑区,长时程增强(Long term Potentiation, LTP)是研究突触可塑性最经典的细胞学模型,被认为是记忆形成的核心细胞基础。既往针对LTP的研究大多集中在蛋白信号通路与基因转录调控层面;受限于技术瓶颈,神经元发生可塑性激活之后,单细胞层面真实的代谢动态变化,长期难以被直接观测。
单细胞代谢组技术的出现,实现了在单个细胞分辨率下解析胞内小分子代谢物,为发掘传统实验手段无法发现的分子调控通路提供了全新研究路径。本文以小鼠海马组织为研究对象,利用单细胞代谢检测手段,解析离体LTP诱导以及活体动物学习行为过程中海马组织多种细胞的代谢组变化,揭示兴奋性锥体神经元内一条全新γ 氨基丁酸(GABA)合成代谢通路,展示单细胞代谢技术在神经科学领域的应用潜力。
研究结果
01.海马组织锥体神经元在LTP过程中细胞内GABA升高
借助单细胞代谢组学技术,研究人员解析海马组织3种细胞类型:兴奋性锥体神经元(PNs)、抑制性中间神经元、星形胶质细胞的代谢组特征(图1a b),共鉴定得到869种代谢物。对比基线条件,LTP诱导后,对多份PNs单细胞样本统计显示,共有172种代谢物(包含胞内γ 氨基丁酸, intracellular GABA, iGABA)上调,3 种代谢物下调(图1c)。
为验证iGABA升高是LTP形成之后所驱动,而非单纯电刺激信号带来的结果,研究使用N 甲基 D 天冬氨酸受体(NMDAR)拮抗剂MK801以及Ca²⁺/钙调蛋白依赖性激酶Ⅱ(CaMKII)拮抗剂 KN93 进行干预。与既往报道一致,两种拮抗剂均可完全阻断LTP(图1e),同时抑制LTP介导的代谢重编程以及胞内iGABA的升高(图1f)。进一步分析显示:LTP诱导前,GABA仅与19种代谢物存在显著相关性;LTP诱导后,GABA可与68种代谢物显著相关,GABA是网络中连接最广泛的分子节点(图1g h)。
与此同时,LTP处理后,中间神经元单细胞样本统计得到176种代谢物上调、15种代谢物下调;星形胶质细胞单细胞样本统计得到127种代谢物上调、18种代谢物下调(图1i j)。然而,尽管两类细胞出现广泛的代谢重编程,它们的iGABA水平并未发生显著改变(图1d)。KEGG通路富集分析筛选得到3条可参与GABA生物合成的代谢通路,这3条通路在3种海马组织细胞类型中,LTP刺激后的激活状态存在显著差异(图1k),提示不同细胞类型在海马组织LTP过程中承担着独特的代谢功能。
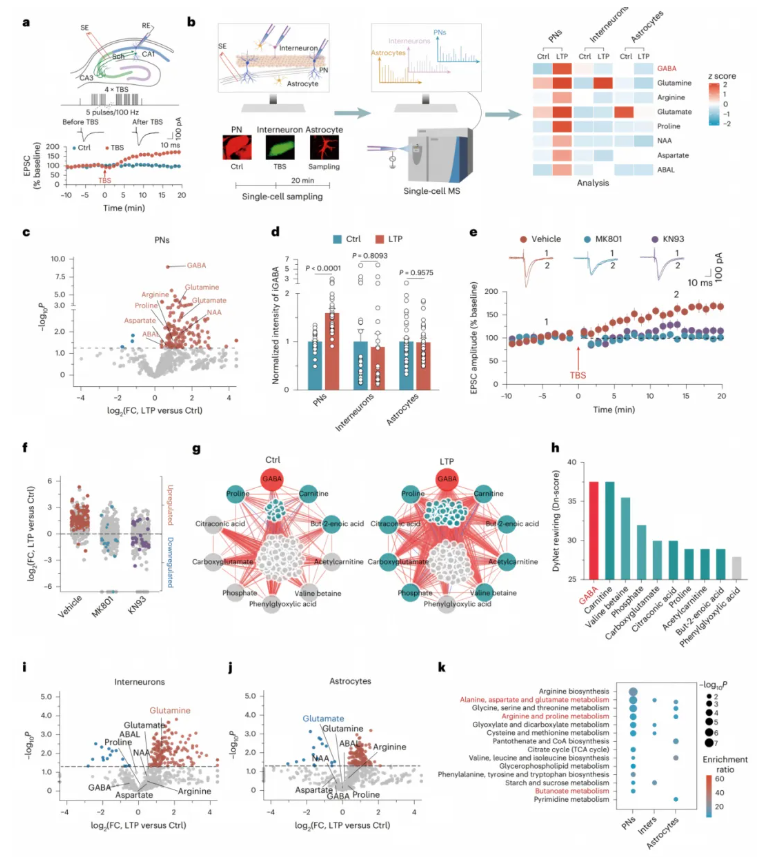
图1. 单细胞代谢组解析LTP刺激下海马组织细胞的代谢变化,锥体神经元特异性出现iGABA升高
02.ALDH驱动锥体神经元中与LTP相关的iGABA升高
已知由GAD65和GAD67介导的谷氨酸 GABA途径,以及ALDHs介导的4 氨基丁醛(ABAL) GABA途径(图2a),是GABA生物合成的两条主要途径。因此,研究人员探究GAD67、GAD65以及ALDH是否参与LTP诱导的iGABA升高。
与已有文献结果保持一致,免疫荧光染色未在小鼠CA1区PNs中检测到GAD67与GAD65(图2b)。脑片孵育[¹⁵N] 谷氨酸的同位素示踪实验显示:LTP形成之后,[¹⁵N]标记的GABA并未出现升高(图2c);但无论是否进行[¹⁵N] 谷氨酸孵育,LTP依然可以引起内源性GABA、谷氨酸以及ABAL水平上升。以上结果提示,GAD介导的GABA合成途径并不参与LTP的调控过程。
将海马组织脑片与GAD抑制剂3 巯基丙酸(3 MPA)共孵育,结果显示:抑制GAD活性既不会改变iGABA的基础水平(图2d),也不会削弱LTP诱导的iGABA升高(图2d),同时也不影响兴奋性突触后电流(EPSC)的振幅(图2e)。综上说明,GAD并非CA1锥体神经元iGABA生物合成、以及LTP过程iGABA升高所必需的分子。
随后研究人员针对ABAL GABA代谢途径开展探究。脑片经[¹⁵N] ABAL孵育后,可在全部CA1锥体神经元中检测到新生成的[¹⁵N] GABA;并且LTP诱导后,[¹⁵N] GABA信号显著上升约72%(图2f)。使用广谱ALDH抑制剂DEAB处理,能够阻断LTP相关的iGABA升高(图2g);将DEAB添加至膜片钳电极内液后,LTP的EPSC幅度显著增加25%(图2h)。上述结果说明:iGABA依靠ALDH依赖的生物合成途径,对海马组织LTP发挥调控作用。
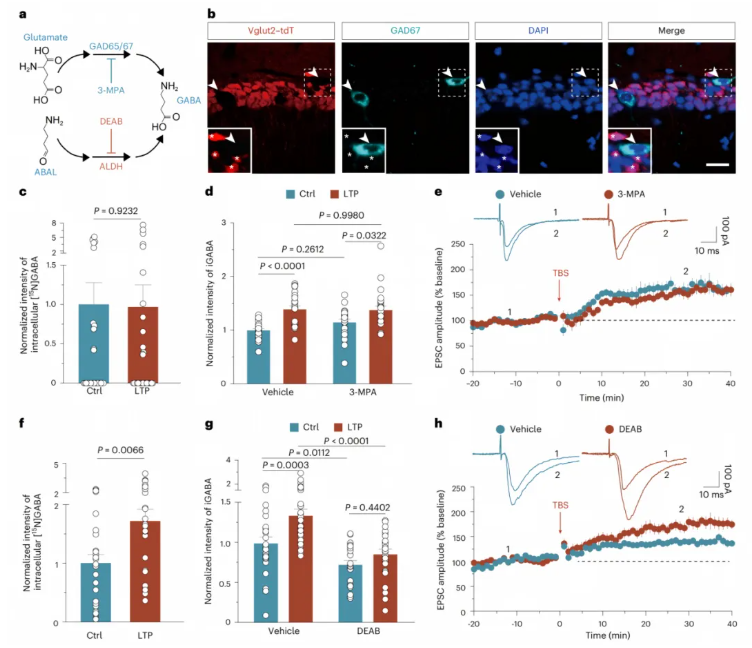
图2. 鉴定调控CA1锥体神经元LTP的GABA生物合成途径
03.锥体神经元ALDH2介导LTP相关的iGABA升高
已知催化ABAL转化生成GABA的两种主要酶分别为ALDH1a1和ALDH2(图3a)。亚型特异性实验结果显示,小鼠CA1区PNs中ALDH2表达水平较高,而ALDH1a1表达相对较低(图3b)。分别使用抑制剂干预ALDH2与ALDH1a1后发现:抑制ALDH2可显著削弱LTP过程中的iGABA升高,同时使EPSC的LTP幅度增加42%(图3c f);而ALDH1a1抑制剂无显著效应。 进一步利用腺相关病毒,在CA1区PNs中特异性敲低ALDH2,同样能够阻断LTP诱导的iGABA上调(图3g k)。功能回救实验表明,通过膜片钳电极向ALDH2敲低的PNs胞内递送GABA,能够显著逆转神经元异常增强的LTP表型(图3l m)。这些数据表明,ALDH2介导的iGABA升高对维持LTP稳态至关重要。
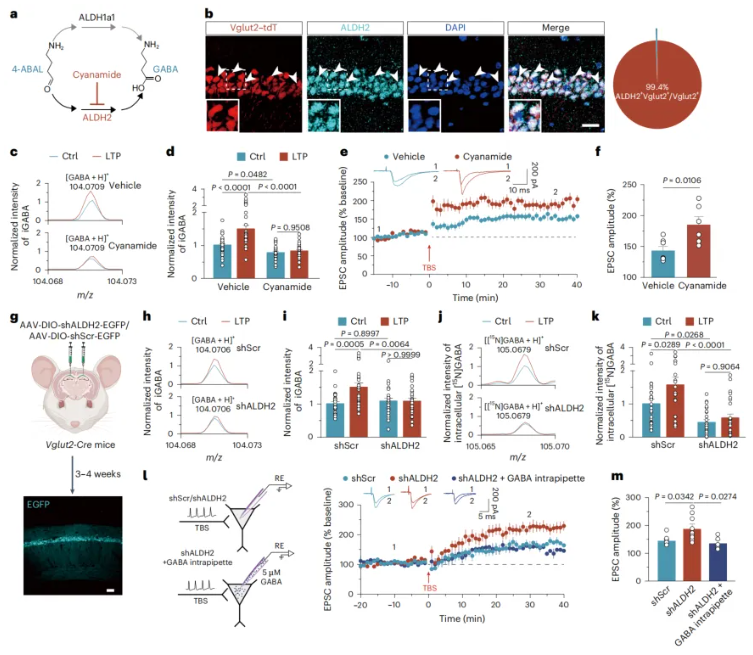
图3. 抑制/敲低ALDH2对LTP诱导iGABA合成的影响
04.iGABA上调抑制CA1区锥体神经元的兴奋性
LTP诱导可显著升高海马组织CA1区PNs的微小抑制性突触后电流(mIPSCs)振幅与频率,并使mIPSCs向高振幅、短发放间隔偏移(图4a c)。PNs特异性敲低 ALDH2(shALDH2)可完全阻断LTP诱导的mIPSCs增强效应(图4a d)。而通过膜片钳电极向PNs胞内直接递送GABA,同样可提升mIPSCs的振幅与频率,且该抑制效应不依赖ALDH2(图4a d)。
LTP诱导与胞内iGABA递送,既可增强PNs突触后GABA响应(图4e f),也能提升突触前抑制性神经元的GABA释放概率(图4g)。利用GAT1抑制剂NNC 711阻断突触前GABA摄取后,LTP与iGABA介导的GABA释放增加被完全消除(图4g);同时mIPSC频率升高被逆转,但mIPSC振幅增强不受影响(图4h j),提示频率变化为突触前机制、振幅变化为突触后GABAₐ受体功能调控。
进一步检测神经元兴奋性发现:胞内GABA递送可显著减少PNs的动作电位(AP)发放数量、降低输入电阻(Rin)、升高AP阈值(图4k n),LTP诱导也可显著抑制PNs兴奋性(图4k n)。PNs敲低ALDH2可完全逆转LTP对神经元兴奋性的抑制作用,但无法阻断外源GABA的抑制效应。综上表明,LTP过程中依赖ALDH2介导的iGABA合成,进而抑制CA1区PNs兴奋性。
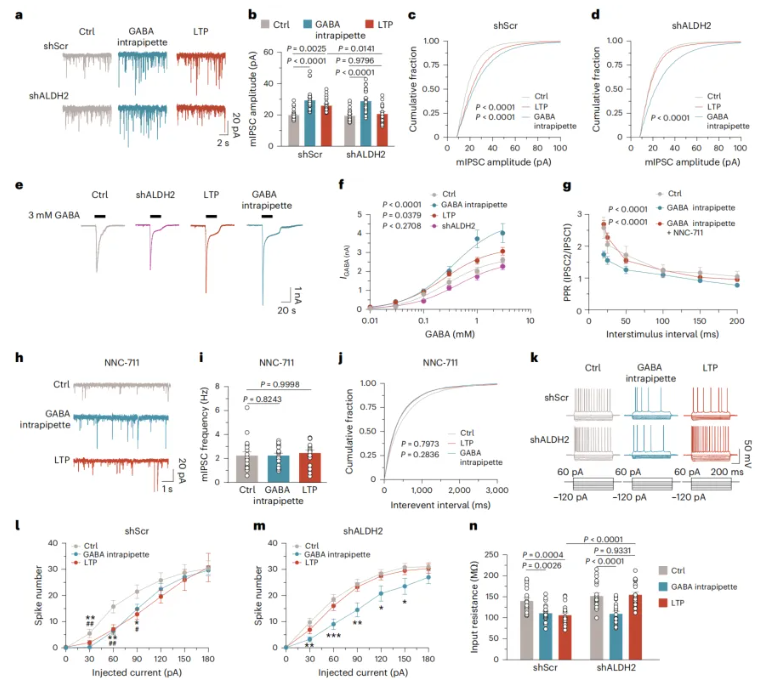
图4. ALDH2介导的iGABA增加在调节PNs兴奋性中的作用
05.海马组织锥体神经元中的ALDH2调节学习适应性
研究人员利用两项依赖海马组织的行为任务——情境恐惧条件反射(CFC)和巴恩斯迷宫(BM),检验学习活动是否会影响CA1区PNs中的iGABA水平。单细胞代谢组学结果显示,CFC训练后,共有79种代谢物显著上调、9种代谢物下调(图5c),提示学习行为引发PNs显著的代谢重编程。KEGG富集分析表明,排名前十的富集代谢途径中有三种直接参与GABA的生物合成(图5d)。
PNs中ALDH2 iGABA的关联验证实验显示:对照组小鼠经历CFC训练后,PNs内源性iGABA水平显著升高,同时[¹⁵N]ABAL向[¹⁵N]GABA的转化效率提升57%;而PNs特异性敲低ALDH2(shALDH2)可完全消除上述升高现象(图5e-f)。该结果表明,ALDH2介导学习活动过程中CA1区PNs的iGABA升高。
新物体位置识别(NOL)实验流程如(图5g) 所示。与对照组相比,shALDH2小鼠对新物体位置的探索时间显著下降(图5h);shALDH2小鼠第一次CFC任务的记忆表现,与后续NOL新位置偏好呈负相关,该负相关在对照组中并未出现(图5i)。此外,仅单独进行NOL训练时,shALDH2可特异性增强24小时长期识别记忆,但不影响2小时短期识别记忆。以上数据提示,ALDH2敲低并不损伤短期空间学习能力,而是特异性损害学习适应性。
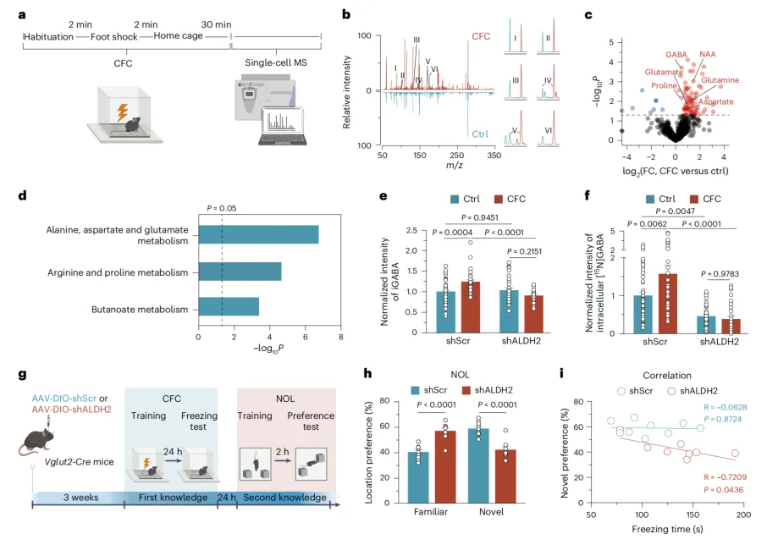
图5. 单细胞代谢组学揭示CFC后海马组织PNs中iGABA的增加,调控学习适应性
与CFC结果相类似,BM训练同样可诱导PNs发生明显代谢改变(图6a c),GABA及其前体相关生物合成通路显著富集(图6d);单细胞水平检测发现[¹⁵N]ABAL向[¹⁵N]GABA转化率可达76%,该升高同样可被shALDH2所消除(图6e f)。上述结果提示:在LTP、学习等海马组织可塑性相关生理事件中,CA1区PNs的iGABA均会发生上调。
巴恩斯迷宫反转学习的实验流程见(图6g)。反转再训练后的测试结果显示:相较于对照组,shALDH2组小鼠找到新目标孔的潜伏期显著延长,在新目标象限停留时间明显减少(图6h i);同时shALDH2小鼠第一次学习与第二次反转学习的记忆能力呈负相关,而对照组呈现正相关(图6j)。综合以上结果说明,CA1区PNs表达的ALDH2对介导小鼠的学习适应性发挥关键作用。
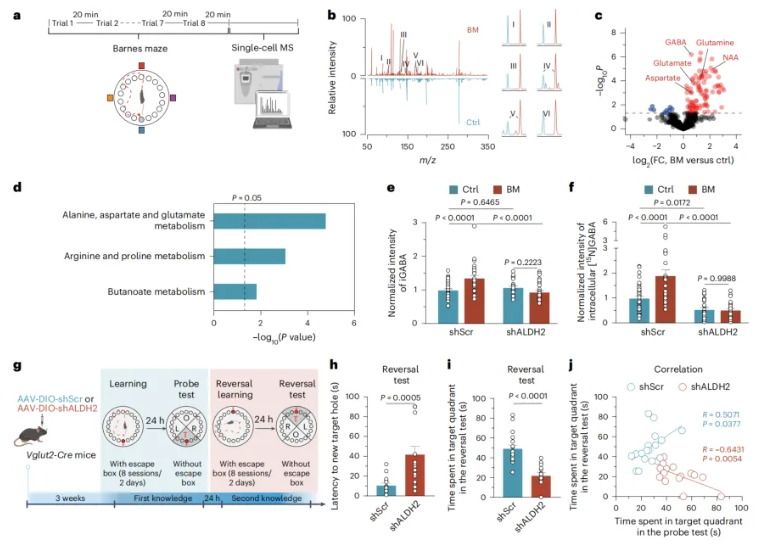
图6. 单细胞代谢组学揭示BM处理后海马组织PNs中iGABA水平升高,调控学习适应性
研究总结
本研究借助单细胞代谢组学技术,解析海马组织CA1区PNs、中间神经元、星形胶质细胞在LTP诱导及动物学习行为过程中的细胞代谢特征,围绕非经典GABA合成机制展开探究。研究证实,PNs内可通过ALDH2介导的4 氨基丁醛(ABAL)途径实现iGABA的生成,区别于传统GAD酶主导的经典GABA合成通路。功能实验表明,ALDH2是神经元活动依赖的iGABA上调的关键分子,iGABA升高能够调控锥体神经元兴奋性,进而参与海马组织介导的学习适应行为调控。
本研究充分体现了单细胞代谢组学技术在解析神经细胞非经典代谢通路、挖掘神经递质全新调控模式上的应用价值,也为后续探究神经递质代谢失衡与神经系统疾病的关联提供了新的研究思路。