
标题:Myo-inositol metabolism counteracts mycotoxin hijacking and confers broad resistance to fungal diseases in crops
发表期刊:Cell Host & Microbe
影响因子:23.2
合作单位:南京农业大学
百趣提供服务:新一代代谢组学NGM 2 Pro、靶标代谢流、MetPro 2(Lip-MS)
研究背景
小麦赤霉病(FHB)是由禾谷镰刀菌(F. graminearum)引起的一种全球性小麦病害,可导致小麦严重减产和籽粒中霉菌毒素积累,长期威胁着人畜健康与粮食安全。该病原菌在侵染过程中从营养生长期转向腐生期,会产生呕吐毒素(Deoxynivalenol, DON)等霉菌毒素和纤维素酶,重编程宿主代谢途径以增强致病性。其中,DON在此过程中发挥核心作用——它触发宿主细胞死亡并促进镰刀菌从侵染位点向相邻小穗扩散。尽管已有研究通过破坏DON生物合成基因(如TRI基因)或表达DON解毒酶来改善FHB抗性,但宿主细胞中DON的具体作用靶点及其分子机制仍不清楚。
近日,南京农业大学团队联合多所院校与研究机构,依托新近发展的邻近标记蛋白质组图谱(LIP-SMap)、跨336份小麦种质的三维全基因组关联分析(3D-TWAS)与¹³C靶标代谢流技术,系统绘制了“DON—小麦互作组图谱”,并由此揭示出一条由肌醇-磷酸脂代谢主导、可在小麦与玉米大田条件下同时赋予广谱抗镰刀菌病害与籽粒低毒素积累的全新“代谢反劫持”防御通路,这为未来培育广谱抗病作物品种提供了重要的理论依据和目标基因。
研究结果
01.DON以NAD⁺竞争结合与变构调控双机制劫持中央心代谢,导致小麦感病
首先,研究通过LiP-SMap技术筛选出126个DON互作蛋白(DIPs),并将其与336份小麦种质的转录组关联分析及田间FHB表型取交集(图1A-C),最终锁定6个核心DIPs(TaMIPS和5个脱氢酶),它们的表达水平均与病害易感性呈负相关。[U-¹³C]葡萄糖示踪显示,DON可削弱糖酵解和三羧酸循环代谢流(图1D)。同时,抑制糖酵解或TCA可诱导细胞死亡并促进FHB(图1E-F)。这意味着,DON可通过靶向NAD⁺依赖酶,破坏糖酵解和TCA稳态,促进小麦感病。根据上述DIPs特性(普遍以NAD⁺为辅酶),研究进一步评估了它们间的互作关系,结果发现:
①DON与NAD⁺共享Rossmann折叠域结合界面(图1J-G);
②DON可诱导不可逆的变构压缩,重塑酶构象(图1H-K);
③DON以竞争性NAD⁺置换与不可逆变构抑制锁定酶失活(图1L-M)。
综上,DON并非简单“抢座”,而是通过竞争性占据NAD⁺口袋并诱导不可逆的变构压缩,将中央代谢酶永久锁定在失活态。
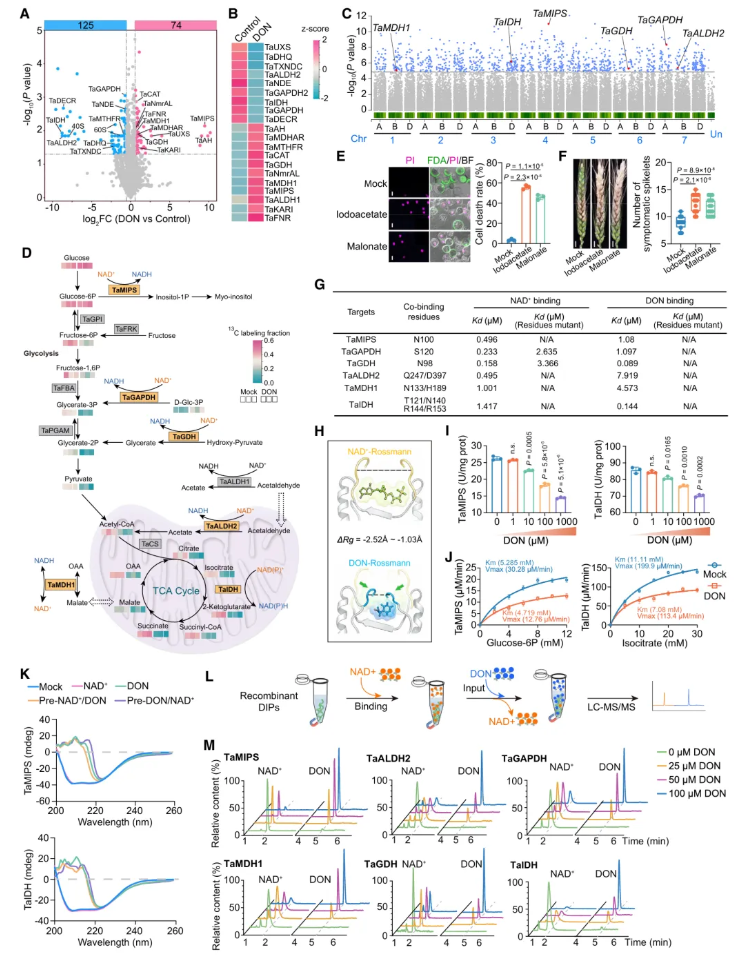
图1. DON劫持多种NAD⁺依赖性酶破坏小麦中心代谢
02.DON驱动的代谢劫持通过NAD⁺/NADH稳态建立反馈环路
糖酵解与TCA循环是维持细胞NAD⁺/NADH稳态的核心。然而,经禾谷镰孢菌PH1侵染的宿主,其NAD⁺/NADH稳态会严重失衡,表现为DON积累、NAD⁺/NADH比值升高(图2A-D)。为验证该比值升高是否会反过来影响DON毒力,研究分别在小麦中过表达NAD⁺合成酶NMNAT与NAD⁺降解酶CD38。结果而言,CD38-OE植株因自身NAD⁺/NADH比值的降低(图2E-G),其死亡减轻(图H-J)、FHB抗性增强(图K-L),而NMNAT-OE相反;但外源NAD⁺仍可加重DON介导的病原菌扩展与生物量积累(图2M-N)。机制上,NAD⁺预处理使原生质体胞内DON积累增加,对DIPs活性的抑制也更强;NMNAT-OE细胞胞质DON更多、代谢抑制更重,CD38-OE则相反(图2O-S)。据此,研究提出一个由寄主自身氧化还原失衡驱动的自我强化毒力回路(图2T):“DON扰乱糖酵解与TCA循环→NAD⁺/NADH比值升高→促进DON跨质膜内流→进一步放大代谢劫持、细胞死亡与感病性”。
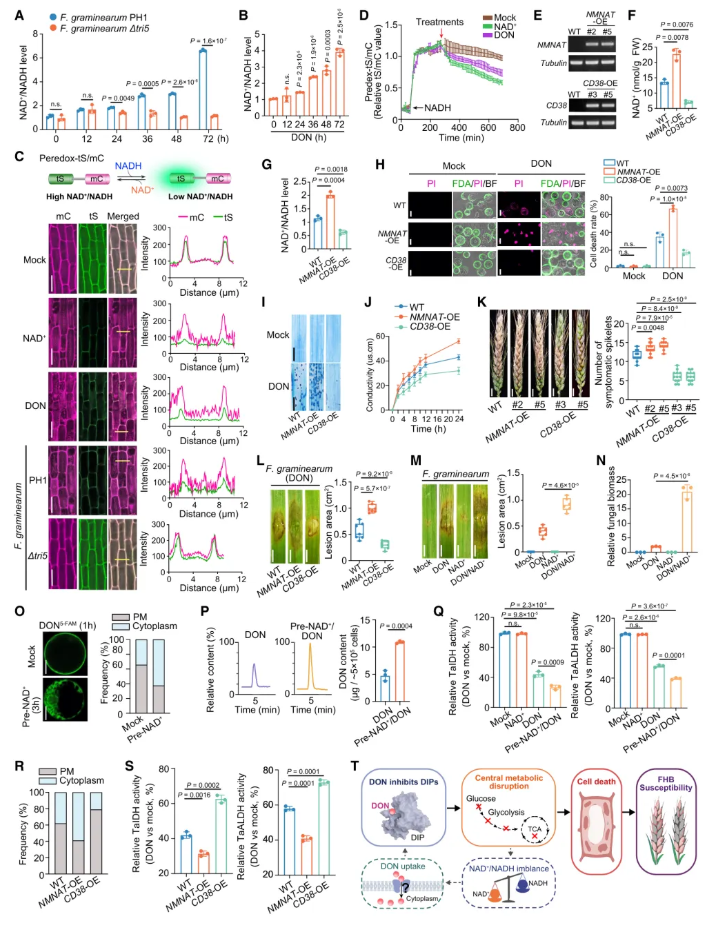
图2. DON破坏宿主NAD⁺/NADH平衡,形成一个增强毒力的自增强反馈环路
03.TaMIPS是小麦抗镰刀菌病害的核心决定因子
进一步在小麦中分别过表达上述6个核心DIPs基因,研究发现,TaMIPS-OE植株对FHB抗性的提升效果最强(图3A-B);并且,当TaMIPS的任一拷贝被敲除时,都会导致FHB加重、DON效应增强,产生更高的NAD⁺/NADH比值(图3C-D)。在细胞水平上,TaMIPS-OE植株也表现出更强的DON耐受能力,而Tamips突变体则更敏感(图3E-H)。因此,TaMIPS是小麦抵御镰刀菌病害的关键决定因子。接着,研究检验了DON是否会干扰TaMIPS与NAD⁺的结合。结果显示,TaMIPS对NAD⁺的亲和力要高于DON;等浓度的DON对TaMIPS-NAD⁺结合几乎无影响,而较高浓度(如4倍)的DON才能竞争性削弱二者结合(图3I)。根据分子对接结果,DON可通过氢键结合于TaMIPS的Rossmann折叠域,其中Asn¹⁰⁰为NAD⁺与DON共享残基,Phe¹⁰²则为DON所特有(图3J)。借助MST验证(图3K)、酶活实验(图3L)及基因过表达(图3M),二者共享的Asn¹⁰⁰最终被确认为关键残基,其对TaMIPS催化活性至关重要,该活性可视为该抗病功能的基础。
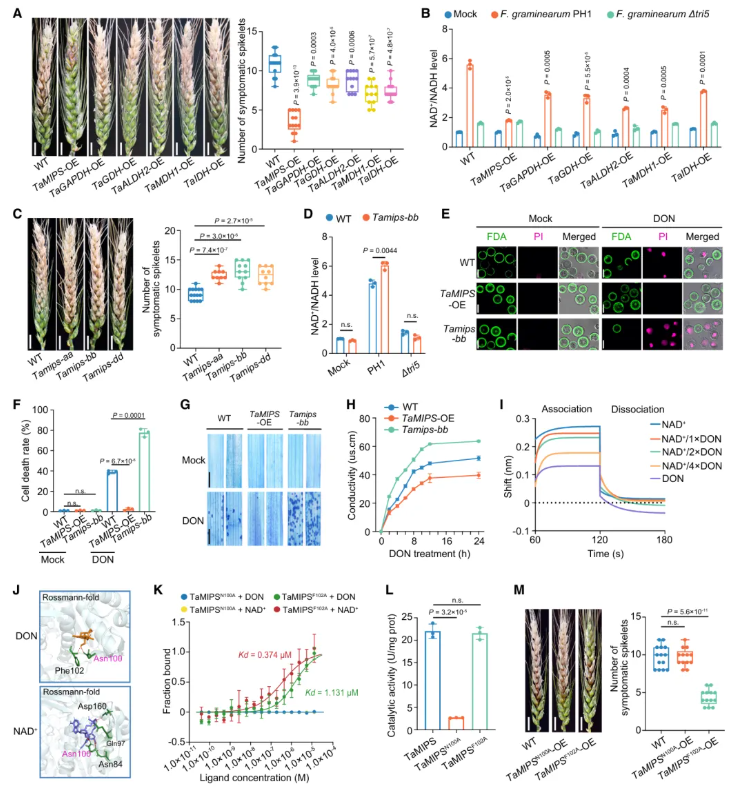
图3. TaMIPS反制DON劫持,赋予小麦FHB抗性
04.TaMIPS在镰刀菌侵染期间重塑小麦肌醇–PI代谢流
为解析TaMIPS介导抗性的机制,研究联合转录、代谢组分析(图4A)及离体叶片测验,发现唯有磷酸肌醇(PI)能显著减轻DON介导Fusarium扩展。基于PI衍生的磷酸肌醇对质膜流动性和囊泡运输的重要性,研究接着利用DON类似物DON⁵⁻FAM追踪其在小麦细胞中的去向。结果显示,DON⁵⁻FAM在TaMIPS-OE细胞中会优先积累于液泡,而Tamips突变体中则会滞留在胞质中;在6个核心DIP-OE系中,也仅有TaMIPS-OE能显著增强液泡DON积累(图4B-C),凸显其独特的“液泡隔离”功能。此外,代谢组还揭示PI(4,5)P₂是关键效应物(图4A),其定量在TaMIPS-OE中升高、在Tamips突变体中降低(图4D)。根据PI(4,5)P₂的胞内动态变化(图4E),研究进一步证实TaMIPS先驱动质膜锚定PI(4,5)P₂合成,进而介导胞外DON经内吞途径转运至液泡中(图4F-I)。值得一提的是,PI(4,5)P₂介导的DON运输是通过维持宿主NAD⁺/NADH稳态,缓解DON对代谢的劫持,从而保护宿主细胞(图4J)。类似地,过表达PI(4,5)P₂合成酶TaPIP5K的植株(TaPIP5K-OE),其DON耐受性(图4K)、赤霉病抗性及DON介导的病原菌扩展也均得到有效改善(图4L)。综上,TaMIPS介导抗性的机制可归纳为“TaMIPS→TaPIP5K→质膜PI(4,5)P₂积累→内吞囊泡装载DON→液泡隔离→维持NAD⁺/NADH稳态→阻断代谢劫持→抗镰刀菌病害”。其中,PI(4,5)P₂所介导的液泡隔离,是宿主“反劫持”防御的实际执行环节。
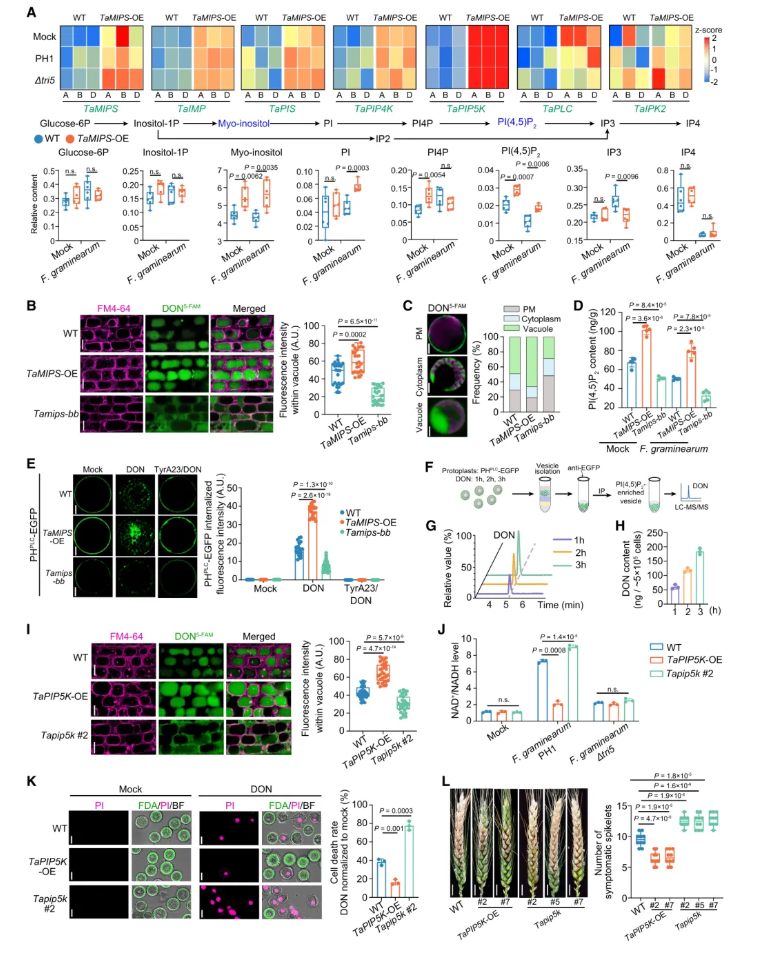
图4. TaMIPS驱动肌醇–PI(4,5)P₂代谢流介导DON液泡隔离
05.TaMIPS以PI(4,5)P₂依赖的方式全局阻断DON劫持、维持代谢稳态
为确定TaMIPS是否作用于PI(4,5)P₂的上游,研究构建TaMIPS-OE/Tapip5k双转基因株系。然而,随着PI(4,5)P₂的合成受阻,该株系的TaMIPS-OE抗病优势被抵消,导致FHB感病性与DON积累均显著提升(图5A-B);同时,DON重新滞留于胞质,液泡积累减少(图5C)。所以,TaMIPS介导的DON隔离与抗病功能,必须以PI(4,5)P₂为下游执行者。另外,与TaMIPS-OE/Tapip5k及Tapip5k株系相比,TaMIPS-OE可限制DON进入细胞质和线粒体(图5D-E),缓解DIP活性的抑制(图5F),恢复糖酵解和TCA相关代谢物的动态稳定(图5G);在六个DIP-OE株系中,TaMIPS-OE对中心代谢的恢复最强(图5H),凸显其反制DON劫持的主导作用。联系前文,DON通过劫持宿主NAD⁺依赖代谢酶,破坏中心代谢,促进细胞死亡和镰刀菌感病;代谢损伤升高NAD⁺/NADH比值,又促进DON吸收,放大劫持;TaMIPS则将葡萄糖-肌醇-磷脂流导向质膜PI(4,5)P₂合成,促进DON经内吞进入液泡,限制胞质劫持,最终维持代谢稳态与细胞存活,赋予镰刀菌病害抗性(图5I)。
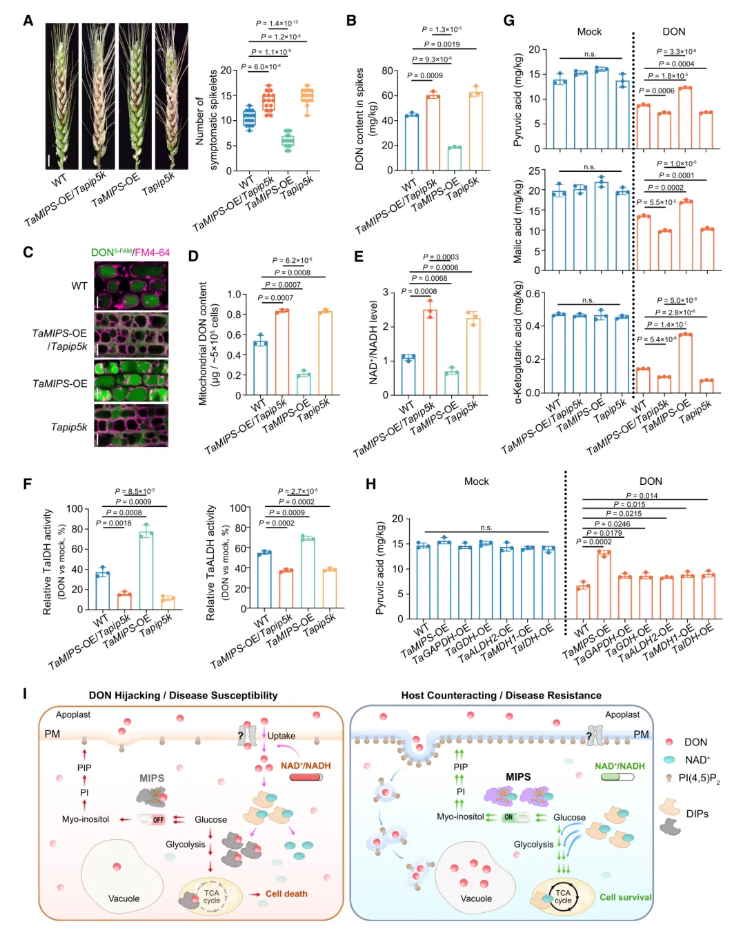
图5. TaMIPS通过PI(4,5)P₂限制DON劫持,从而稳定代谢稳态
06.过表达MIPS在小麦与玉米大田条件下赋予镰刀菌病害抗性
为评估TaMIPS的田间适用性,研究对南京赤霉病病圃中的TaMIPS-OE株系进行了为期两年(2024-2025)的大田鉴定。结果而言,感病TaMIPS-OE的健康籽粒更多,产量损失更小(图6A-C),籽粒中DON含量也更低(图6D);同时,健康TaMIPS-OE的主要农艺性状均无不良影响,产量也与对照相当(图6E);尽管该株系籽粒植酸(PA)含量虽略有升高(图6F),但仍处于正常范围内。另外,在两个中抗赤霉病品种(扬麦18和宁麦38)中过表达TaMIPS也同样出现上述表型(图6C-D),说明其具有跨遗传背景的稳健性。不仅如此,由此类镰刀菌所引起的玉米穗腐病(GER),造成的玉米NAD⁺/NADH失衡(图6H)、商品价值降低、DON积累、产量损失(图6I-L),均能在ZmMIPS-OE株系中得到有效改善;并且,健康ZmMIPS-OE植株的籽粒发育和产量性状均保持正常(图6I, 6M)。综上,过表达MIPS策略在大田尺度上实现了“减病、减毒、保产”,这为抗赤霉病与毒素安全育种提供了可落地的技术路径。
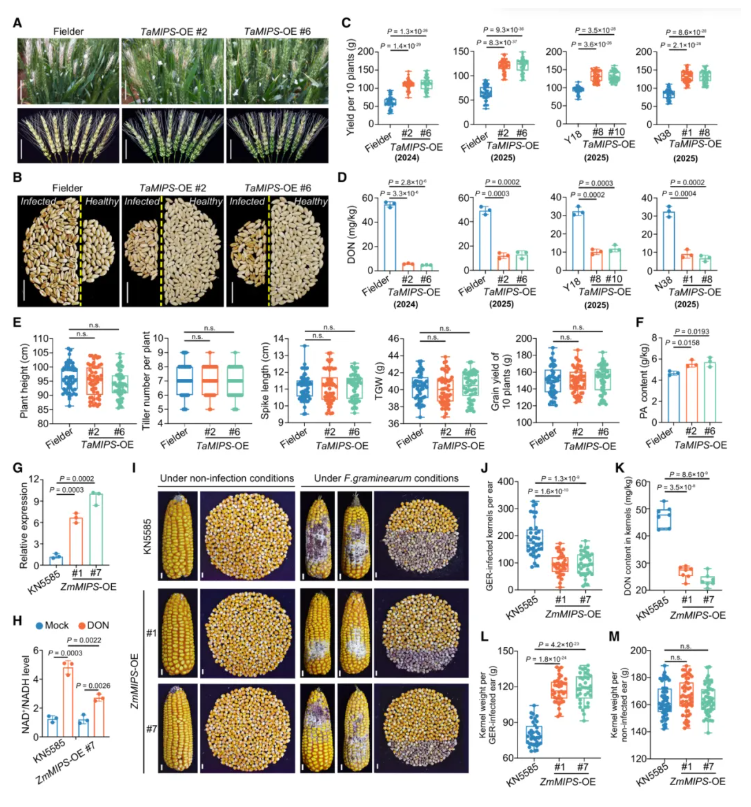
图6. 过表达MIPS在小麦与玉米大田条件下赋予赤霉病与茎腐病抗性
07.精准编辑TaMIPS-uORF提升小麦赤霉病抗性并降低毒素污染
通过整合40多个小麦泛基因组组装与2,084份重测序材料分析,研究发现三类TaMIPS(-A/B/C),但TaMIPS-A却比另外两类缺少了uORF元件(图7A)。在双荧光素酶实验中,删除TaMIPS-uORFs或突变其起始密码子,可使LUC活性提高6-8倍(图7B-C),代表该原件具有翻译抑制功能。基于此,研究进一步利用CRISPR-Cas9对Fielder背景中TaMIPS的uORF起始密码子进行编辑,并成功获得三类不同的纯合株系(图7D)。它们对蛋白积累(图7E)、FHB抗性(图7F)、产量损失(图7G-I)、籽粒DON积累(图7J-K)等均有着不同程度的改善,同时健康状态下的产量性状均保持正常(图7L),仅植酸轻微上升(图7M)。这也就意味着,通过精准编辑TaMIPS-uORFs可在不引入外源基因、不牺牲产量的前提下,同步实现“增抗、减毒”,可视为一种全新且高效的育种策略。
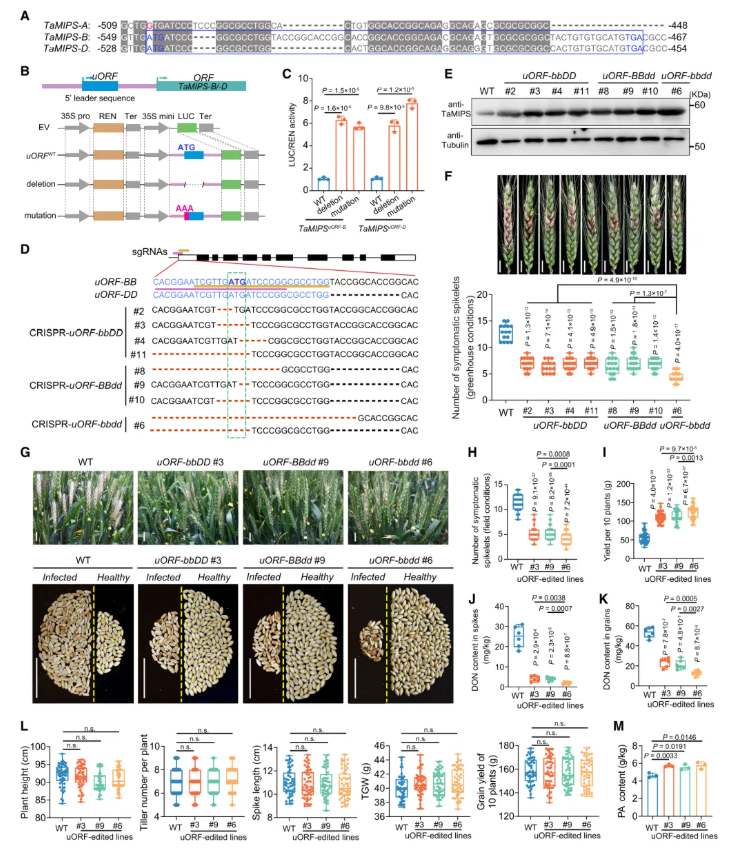
图7. 精准编辑TaMIPS-uORF提升小麦赤霉病抗性并降低DON污染
研究总结
本文以小麦赤霉病与玉米茎腐病的致病毒素DON为切入点,综合LIP-SMap图谱、跨种质3D-TWAS与¹³C靶标代谢流等技术,首次揭示出一条“代谢反劫持”的完整分子通路:DON通过竞争性占据NAD⁺依赖型中心代谢酶(TaMIPS等)的Rossmann折叠域辅酶口袋,并诱导不可逆的变构压缩将酶锁定于失活态,瓦解糖酵解与TCA循环;由此产生的代谢损伤反向升高NAD⁺/NADH比值、促进DON内流,形成自我放大的毒力回路。宿主则以TaMIPS为核心反制因子,经其Asn¹⁰⁰介导的催化活性把葡萄糖-肌醇-磷脂代谢流重定向至质膜PI(4,5)P₂合成,由TaPIP5K驱动内吞将DON包裹入囊泡并隔离进液泡,从而阻断胞质劫持、维持氧化还原稳态与细胞存活。该机制在两年大田试验中转化出可量化价值,且CRISPR精准编辑TaMIPS的uORF能够实现“增抗、减毒、保产”。总的来说,该工作阐明了“代谢流重塑—液泡毒素隔离—代谢稳态维持”的抗病新机制,这为禾谷类作物抗镰刀菌病害的分子育种提供了重要的理论依据和基因编辑靶标。